
植物遭遇干旱、盐胁迫、极端温度或病原侵染时,质膜及细胞内膜系统的状态可发生变化。膜系统中的信号如何传递至细胞核,进而调控防御与适应相关基因的表达?膜转运蛋白除运输水分和其他小分子外,如何参与这一过程?这些问题是理解植物环境适应机制的重要切入点。
围绕上述问题,kaiyun开云官方网页版农林生物安全全国重点实验室吴建国教授和张帅教授团队在《植物学报》(Journal of Integrative Plant Biology)发表了题为“Defining Membrane-Bound Transcription Factors in Plant Stress Responses”(界定植物胁迫响应中的膜结合转录因子)的综述论文。文章以膜结合型转录因子(membrane-bound transcription factors,MTFs)为核心,系统梳理其激活途径,重点辨析转运蛋白参与的信号调控与膜状态变化介导的调控机制,讨论其在植物抗逆与免疫中的作用(图1)。
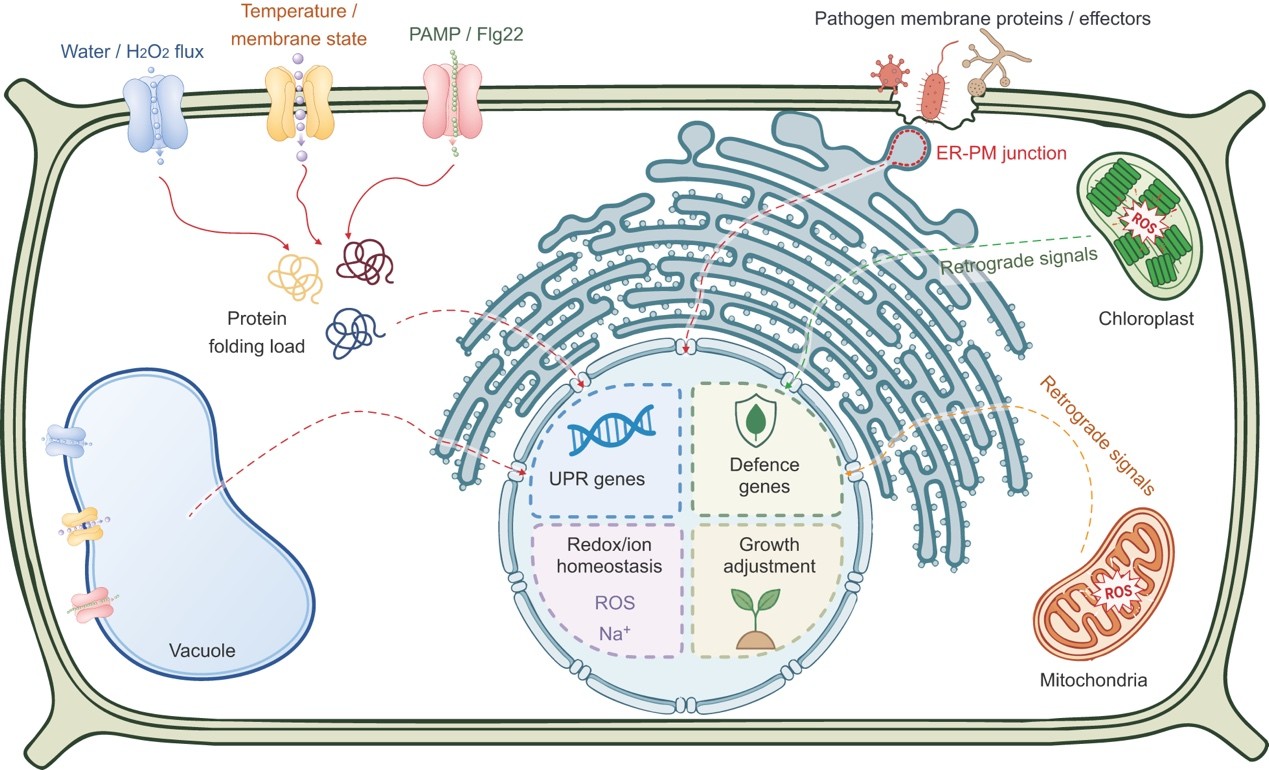
图1. 植物膜相关胁迫信号与细胞核转录响应的整合框架
1 膜结合型转录因子的多样化激活机制
膜结合型转录因子通常依靠自身跨膜结构域锚定于质膜或细胞内膜系统。胁迫信号可通过蛋白水解、RNA剪接或翻译后修饰等途径,调控相关转录因子的入核及活性。
对于内质网锚定的bZIP17和bZIP28,盐胁迫或内质网应激可促使其由内质网转运至高尔基体,经蛋白水解释放可进入细胞核的活性片段。另一类内质网应激通路则通过IRE1分别介导拟南芥bZIP60和水稻OsbZIP50 mRNA的非常规剪接,使新合成的蛋白获得不同的C端结构并有效进入细胞核。NAC家族中的膜结合型成员也受蛋白水解、氧化修饰、磷酸化及核转运等过程调控,可响应温度、活性氧和细胞器状态变化。这些不同的激活途径,使植物能够将膜系统的状态变化转化为细胞核内的转录响应(图2)。
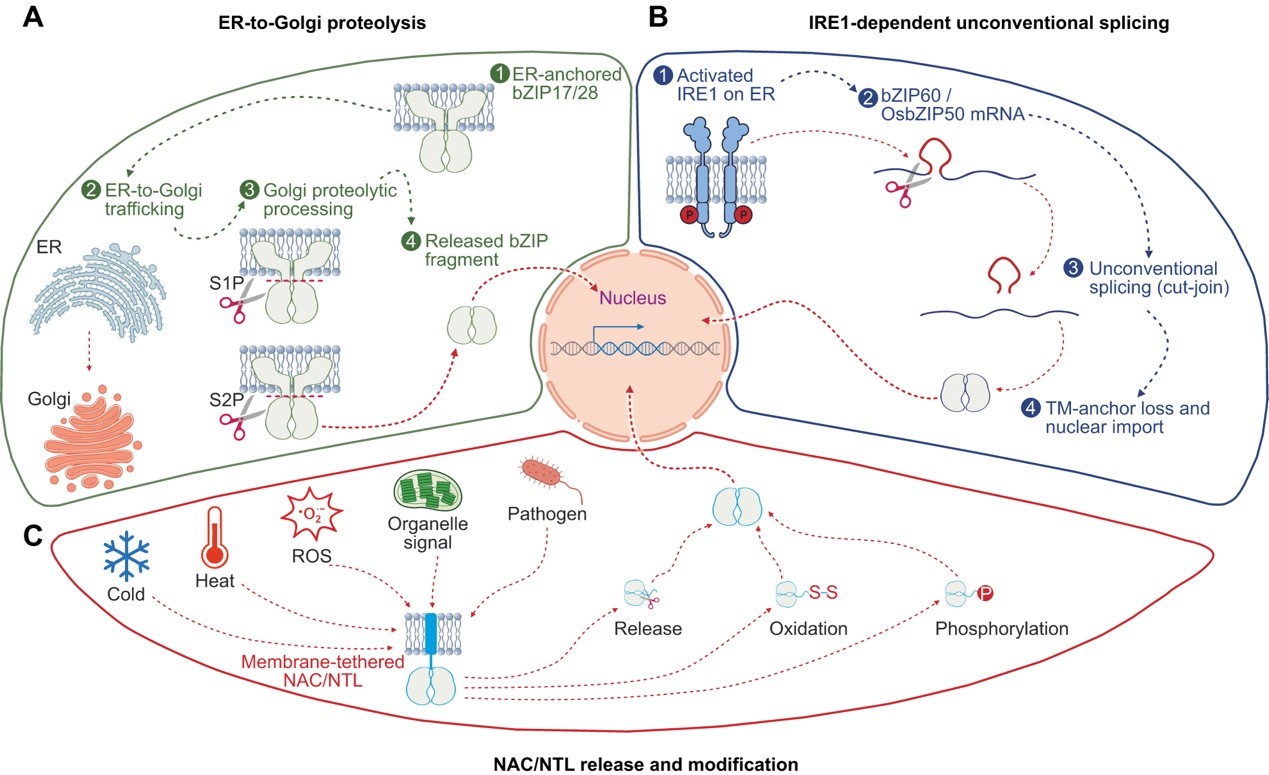
图2. bZIP与NAC/NTL转录因子的代表性激活机制
2 水通道蛋白参与膜到细胞核的信号传递
文章重点讨论了PIP型水通道蛋白与膜锚定MYB转录因子的功能联系,为理解膜转运与转录调控之间的关系提供了具体实例。
在水稻中,OsPIP2;2与OsmaMYB在质膜上形成复合物。已有研究表明,病原相关分子模式flg22刺激可诱导OsPIP2;2的Ser125位点磷酸化,伴随H₂O₂运输增强、OsPIP2;2与OsmaMYB互作减弱以及OsmaMYB的蛋白水解加工。释放的OsmaMYB活性片段进入细胞核,诱导PR1a、PR10、PBZ1和WRKY45等防御相关基因表达(图3)。PIP–MYB相关模块也参与非生物胁迫响应。例如,月季RhPIP2;1–RhPTM及苜蓿MsDHN1–MsPIP2;1–MsmMYB模块均与干旱适应有关。这些研究提示,水通道蛋白除承担跨膜运输功能外,还可能通过蛋白互作参与膜—核信号传递。这些MYB转录因子本身具有跨膜锚定结构,其膜定位并非完全依赖与PIP蛋白的结合。
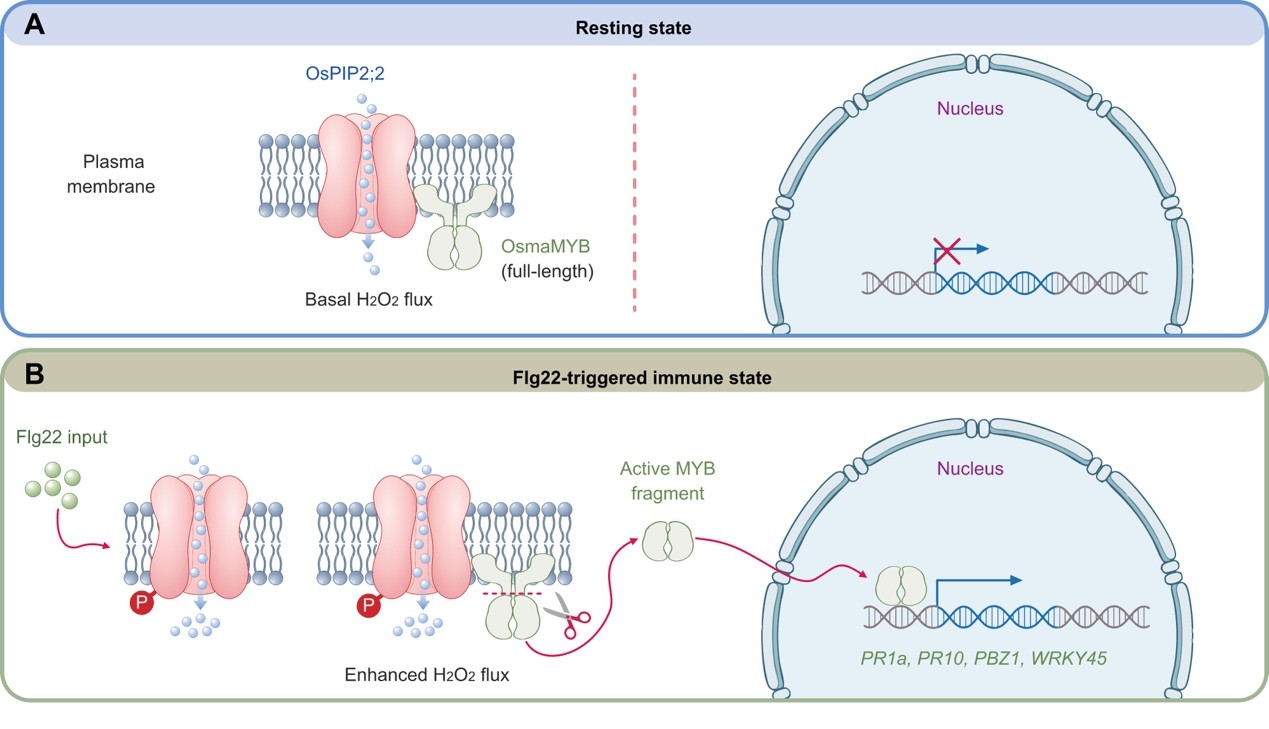
图3. flg22诱导的OsPIP2;2–OsmaMYB模块及其免疫调控机制
3 调控机制的关键问题与作物改良前景
该综述强调,转运蛋白参与转录因子激活的证据,尚不能直接证明底物运输能够触发转录因子的释放。以OsPIP2;2–OsmaMYB为例,现有Ser125位点突变同时影响H₂O₂运输和蛋白互作,尚难区分两者的独立贡献。未来需利用分别扰动运输能力与蛋白互作的功能分离材料,明确两者在转录因子激活中的作用。同时,转录因子入核或胁迫标志基因表达上调,本身也不足以确立特定转运蛋白的直接上游作用。此外,膜结合型转录因子可增强防御与逆境适应,其持续激活也可能抑制植物生长,部分应激通路还可能被病原物利用。因此,将其用于作物改良,需要明确内源性激活机制、激活阈值及信号终止过程,并综合评估不同环境下的生长恢复与产量稳定性。该综述从膜转运、膜状态与转录调控的交叉视角,梳理了植物将环境变化转化为细胞核转录响应的主要机制,并提出需要进一步厘清的关键问题,为理解植物抗逆与生长的协调调控、探索作物抗逆改良策略提供了参考。
吴建国教授和张帅教授为该综述的共同通讯作者,硕士生朱志鸿和易德涛为共同第一作者。该工作得到福建省自然科学基金杰出青年科学基金项目(2025J010022)、福建省自然科学基金面上项目(2024J01378)和农林生物安全全国重点实验室联合攻关项目(SKLRP2504)等资助。
文章链接:https://onlinelibrary.wiley.com/doi/10.1111/jipb.70429


